

【微信扫码关注核序】
前言:
在蛋白质翻译过程中,核糖体并非一直顺畅完成肽链合成。当 mRNA 上出现稀有密码子、多碱性氨基酸序列或者 RNA 损伤时,核糖体就会发生翻译停滞。如果停滞的核糖体得不到处理,一方面会持续合成毒性截短多肽,另一方面会占用核糖体资源,给细胞带来巨大的蛋白组压力。
为应对这种危机,真核生物演化出多条翻译质量控制通路,其中NGD(No‑Go Decay,受阻 mRNA 降解)专门识别核糖体停滞的 mRNA,并将其降解清除。目前已知核糖体之间的碰撞是 NGD 的关键识别信号,E3 泛素连接酶 ZNF598 可以标记碰撞核糖体启动后续降解。
但这里存在一个关键科学问题:细胞如何区分生理上短暂的翻译暂停,和需要启动降解的病理性核糖体停滞?仅仅依靠核糖体碰撞信号,不足以完成精准判断,是否还有翻译延伸因子参与这一识别过程,此前并不清楚。
eIF5A 是真核生物中非常特殊的翻译延伸因子,必须经过亚精胺介导的羟腐胺赖氨酸(hypusine)修饰才具备活性,已知它的经典功能是帮助核糖体跨过脯氨酸等难翻译的序列。
2026年9月8日,Joshua A. Arribere 课题组在PNAS上发表论文,以秀丽隐杆线虫和酿酒酵母为模式生物,结合翻译组学 Ribo-seq 技术,揭示了 eIF5A 在帮助核糖体克服翻译障碍之余,还能在核糖体陷入无法恢复的停滞时,与核糖体碰撞信号协同,触发 mRNA 降解。
01 遗传筛选揪出 NGD 新因子:多胺转运蛋白 CATP‑6
为筛选能够抑制核糖体停滞 mRNA 的调控因子,研究人员此前设计了一套核糖体停滞报告系统(RareArg 报告子):GFP 信号越高,代表 NGD 功能越弱。
随后研究人员在线虫中开展正向遗传筛选,意外筛到多胺转运基因 catp‑6;catp‑6 突变后核糖体停滞报告子显著去抑制,NGD 通路受损。然而关键对照实验显示,catp‑6 缺失不影响 NMD(Nonsense‑mediated decay,无义介导 mRNA 降解)、NSD 通路(Non‑Stop Decay,无终止密码子 mRNA 降解),证明它并非全局干扰 mRNA 降解,而是特异性作用于核糖体停滞介导的 NGD。
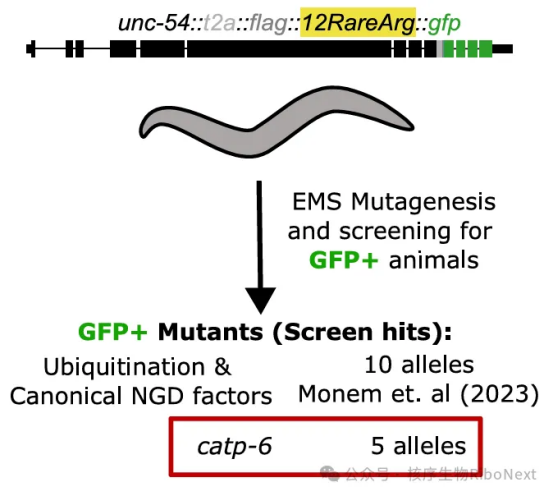
RareArg 报告子结构与正向遗传筛选流程
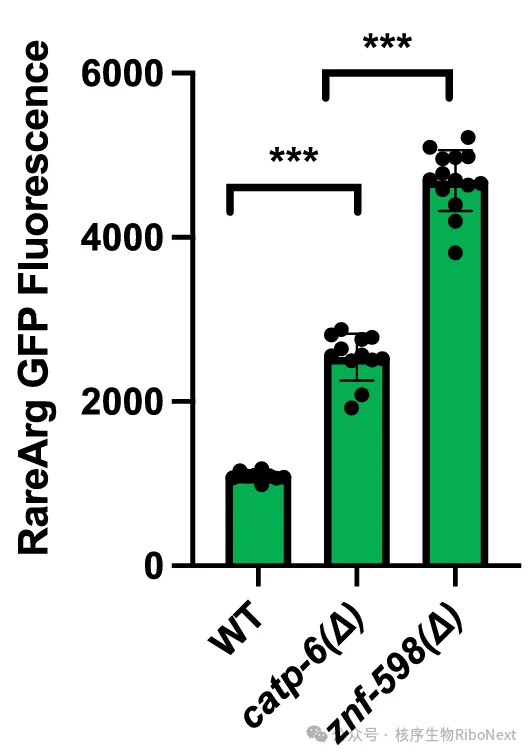
敲除 catp‑6 或 E3 泛素连接酶 znf-598,
都会导致 NGD 通路受损,使得停滞 mRNA 不被降解,报告蛋白 GFP 大量积累
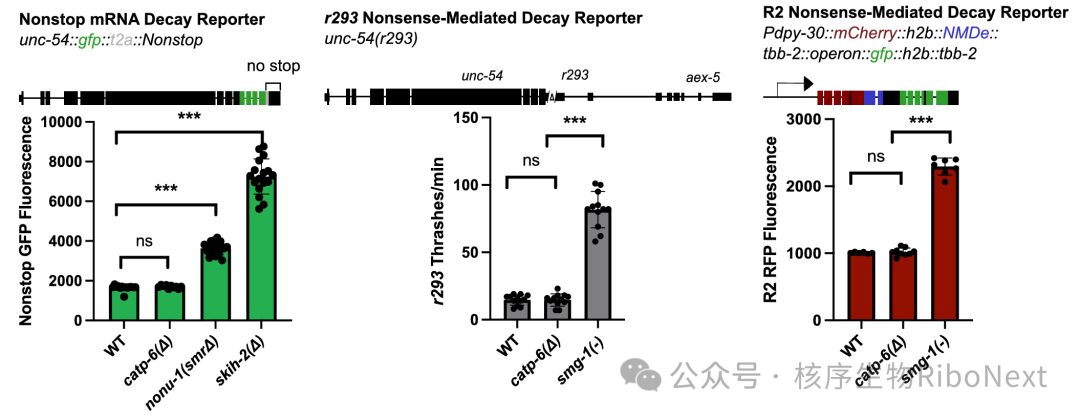
catp‑6 突变不影响 NSD、NMD 通路
此外,CATP‑6 为人源 PARK9/ATP13A2 同源蛋白,属于 P5 型 ATP 酶;通过 CATP‑6 的催化失活突变实验发现其可以直接破坏 NGD 功能,证明CATP‑6 依靠多胺(亚精胺)转运功能发挥作用,而非蛋白本身。
02 多胺不足,带来 eIF5A 功能受损的分子证据
CATP‑6 负责转运亚精胺,而亚精胺是 eIF5A 发生羟腐胺赖氨酸修饰的底物。此前已有文献报道称羟腐胺修饰对 eIF5A 功能、细胞存活不可或缺。研究人员据此提出一个假设:catp‑6 突变后胞内亚精胺下降,eIF5A 羟腐胺修饰水平降低,导致 eIF5A 活性受损。
eIF5A 功能受损的标志是核糖体在脯氨酸富集基序发生累积。为了检测全虫 mRNA 翻译变化,研究人员通过 Ribo‑seq 技术,寻找 eIF5A 功能受损对应的翻译特征。Ribo-seq 的结果表明,在 catp‑6 突变线虫中,核糖体在脯氨酸富集基序(PPX/XPP/PXP)发生显著累积,核糖体暂停分数上升,这正是 eIF5A 功能下降的标志性特征。
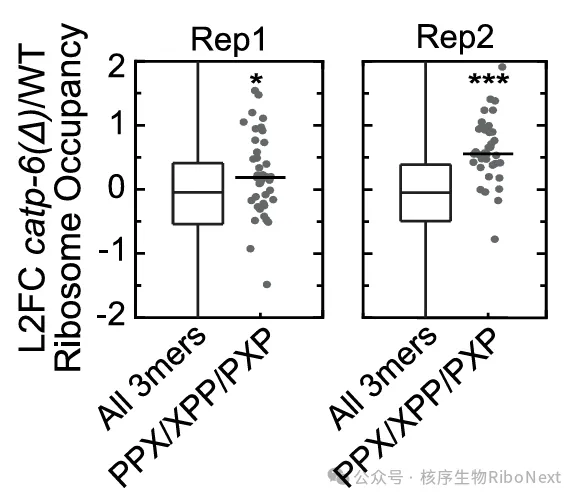
统计核糖体在三肽基序 PPX / XPP / PXP(脯氨酸富集 motif)的相对核糖体占据
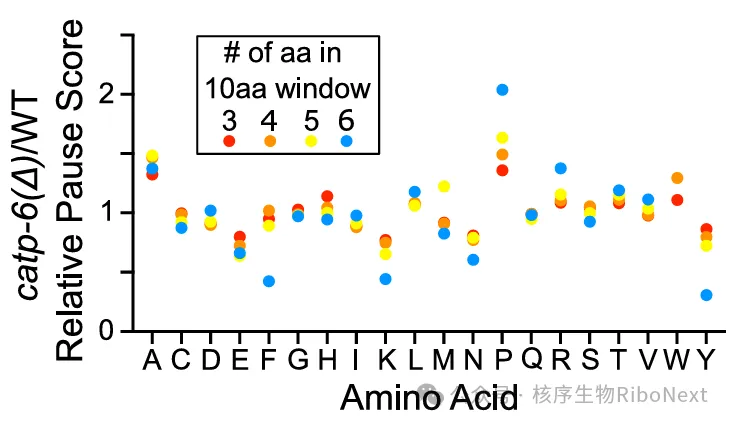
暂停分数 = 窗口内部核糖体读数 / 窗口外核糖体读数;只有脯氨酸(P)、精氨酸(R)富集窗口出现显著升高的暂停分数
03体内证实:eIF5A 及其羟腐胺修饰是 NGD 必需
接下来为了验证 catp‑6 突变体 NGD 通路缺陷,来源于 eIF5A 羟腐胺修饰不足,研究人员对 eIF5A 羟腐胺修饰通路开展遗传验证。
eIF5A 的羟腐胺修饰需要两步酶促反应:①DHPS‑1 催化生成脱氧羟腐胺修饰;②DOHH‑1 进一步催化,生成成熟羟腐胺修饰。
结果表明,敲除修饰通路基因dhps‑1 或者 dohh‑1 ,都会造成 NGD 通路受损;同步在线虫体细胞中敲除 eIF5A 同源基因 iff‑2 也会使得 RareArg 报告子同样发生去抑制。以上结果证实秀丽隐杆线虫 NGD 通路,确实需要 eIF5A 蛋白以及它的羟腐胺修饰。
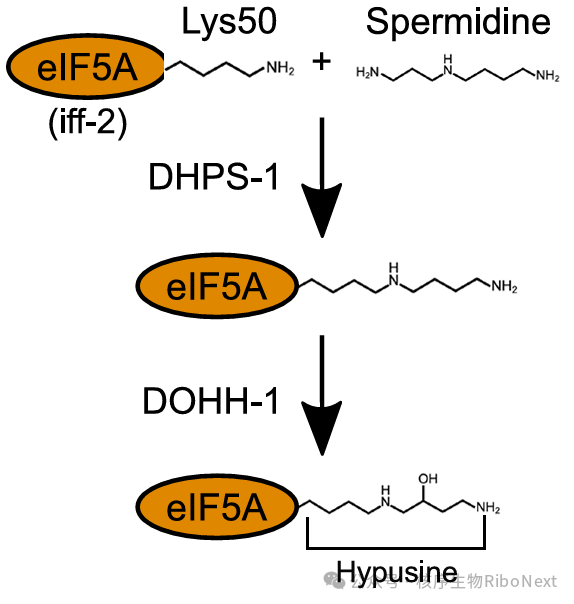
eIF5A 羟腐胺修饰两步酶促反应的通路示意图
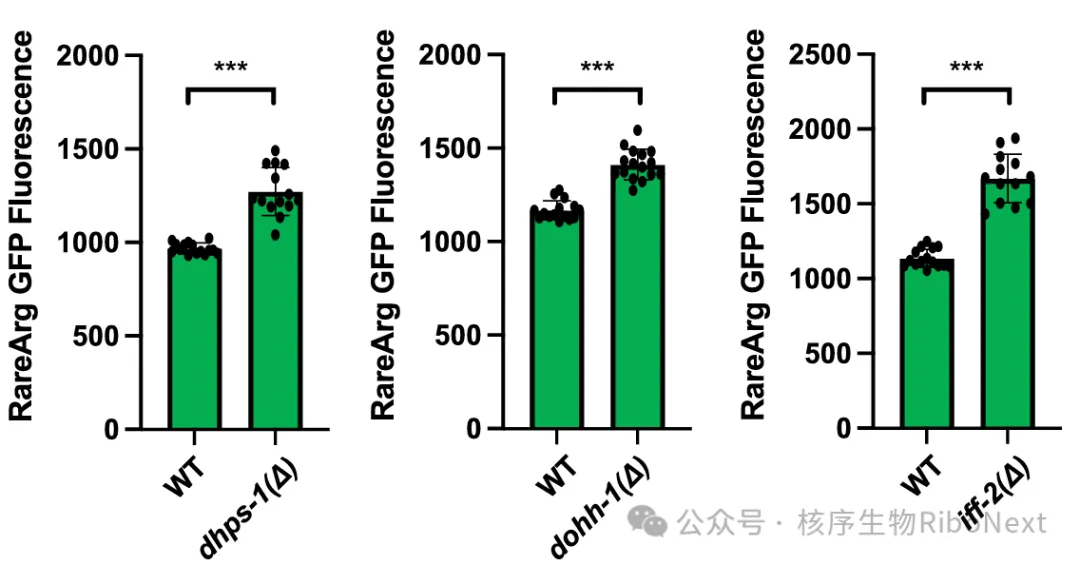
野生型与 dhps-1 敲除、dohh-1敲除和 iff-2 敲除组的 RareArg 报告子 GFP 定量比较图
由于 eIF5A 是细胞必需蛋白,研究人员为了区分 NGD 缺陷是 eIF5A 特异性缺失,还是细胞整体损伤带来的副效应,另外选取了 4 个核心基因表达通路必需基因突变组:rpt‑5(蛋白降解)、rbp‑9(mRNA 转录)、eEF1A.1(翻译延伸)、eIF3.H(翻译起始)。
筛选标准:
①必需基因,突变后纯合个体存活但不育,和 eIF5A 突变表型类似;
②基因参与核心基因表达过程。
这 4 个突变组均无法重现类似 catp‑6 突变组的 RareArg 报告子表型,表明 NGD 通路受损,并不是细胞整体生理扰动带来的非特异性结果,而是 eIF5A 缺失的特异性后果。
研究人员进一步在酿酒酵母中使用 GC7 药物抑制 eIF5A 羟腐胺修饰,成功验证了 eIF5A‑NGD 的调控关系,两套独立报告系统证明该机制在真核生物中保守。
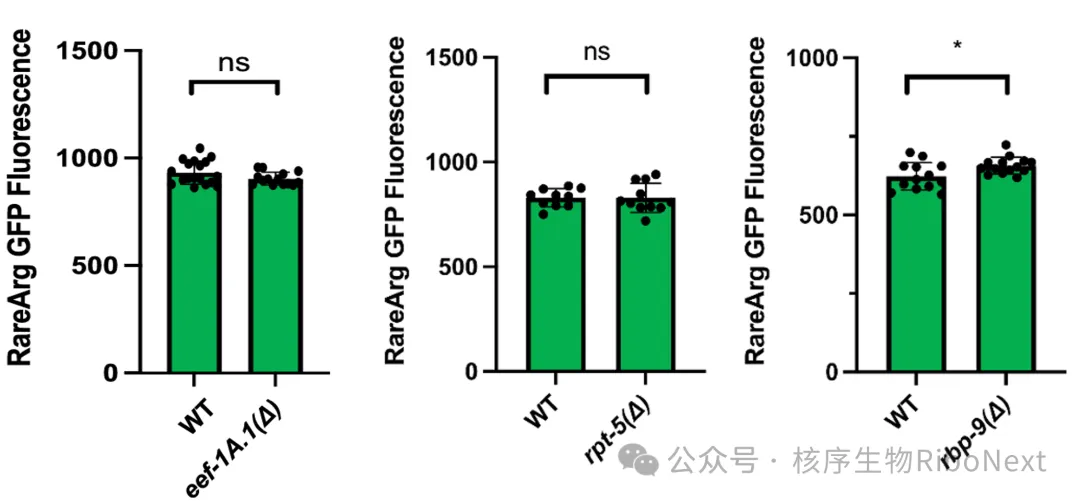
野生型与 rpt‑5 敲除、rbp‑9敲除和 eEF1A.1 敲除组的 RareArg 报告子 GFP 定量比较图
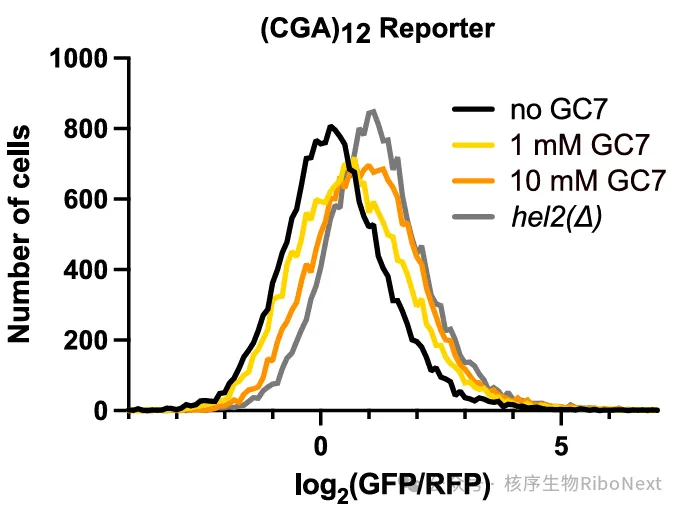
抑制 eIF5A 羟腐胺修饰,酵母 NGD 通路显著受损
04 工作模型:eIF5A 实现 “救援‑识别” 双重角色
最后,研究人员探究了 eIF5A 参与 NGD 的潜在分子模型是否与真核生物的 ISR 整合应激通路(Integrated Stress Response)相关。
假说:
①catp‑6 突变体内大量核糖体暂停,激活 ISR;
②ISR 通路磷酸化 eIF2α,降低每条 mRNA 核糖体密度;
③核糖体碰撞事件随之减少;
④核糖体就有机会完成停滞序列的延伸,最终 NGD 通路活性下降。
通过检测 ISR 通路关键突变 gcn‑2 突变与eif‑2α(S49A) 突变,研究排除 ISR 整合应激反应作为主要驱动机制,提出核心工作模型:
当核糖体遭遇难翻译序列,活化 eIF5A 优先尝试救援、促进翻译延伸;若阻滞无法解除,eIF5A 持续驻留核糖体 E 位点,协同核糖体碰撞信号,被 ZNF598 识别,启动 NGD 介导 mRNA 降解。
eIF5A 相当于分子标尺,帮助细胞区分瞬时暂停与病理性停滞。
野生型与 gcn‑2 敲除、eif‑2α(S49A)敲除和 catp-6;gcn‑2 双敲除组的 RareArg 报告子 GFP 定量比较图
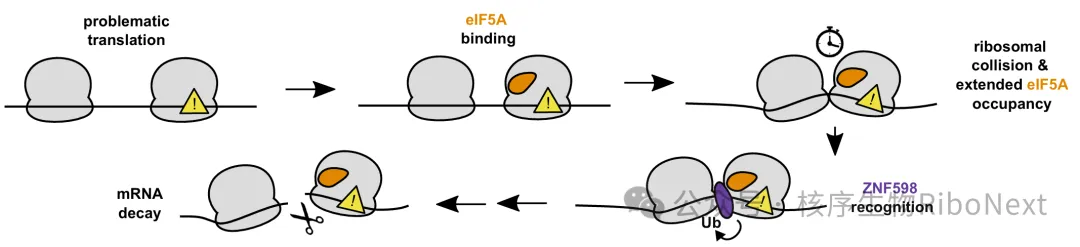
eIF5A 参与核糖体暂停‑停滞命运抉择
的工作模型
结语
这篇 PNAS 的工作,借助线虫遗传筛选,打通了多胺‑eIF5A‑NGD 这条调控轴。同一个蛋白 eIF5A,既做翻译的救援者,又充当故障的检测器,精妙实现细胞翻译质量的精细把控,也为神经退行疾病的病理机制提供全新思考角度。
原文链接:
https://www.pnas.org/doi/10.1073/pnas.2533876123
邮箱:hr@ribonext.com
地址:
总公司:浙江省杭州市滨江区长河街道滨安路688号5幢6层616室
宁波分:浙江省宁波市鄞州区首南街道都市工业园区A区202室
深圳分:深圳市罗湖区桂园街道红村社区宝安南路2001号中政华庭3067
电话:17506717396
Copyright © 2025 核序(宁波)生物科技有限公司